
パリオスコーピオ
| パリオスコーピオ | ||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|
 パリオスコーピオの復元図 | ||||||||||||
| 地質時代 | ||||||||||||
| 古生代シルル紀テリチアン期 (約4億3,750万 - 4億3,650万年前)[1] | ||||||||||||
| 分類 | ||||||||||||
| ||||||||||||
| 学名 | ||||||||||||
| Parioscorpio Wendruff et al., 2020a [1] | ||||||||||||
| タイプ種 | ||||||||||||
| Parioscorpio venator Wendruff et al., 2020a [1] |
パリオスコーピオ(Parioscorpio[1])は、約4億3,700万年前のシルル紀に生息した所属不明[2]の化石節足動物の一属。先頭に鎌のような付属肢をもつ[2]、アメリカで見つかった Parioscorpio venator という1種のみによって知られる[1]。どの節足動物の分類群にも当てはまらない特徴をもち[2]、かつては甲殻類やサソリなどと誤解釈されていた[3][4][5][6][1][7][2]。
名称
学名「Parioscorpio」はラテン語の「pario」(先祖)と「scorpio」(サソリ)の合成語で、これは命名当初の本属が原始的なサソリと誤解釈されたためである(後述参照)[1][2]。模式種(タイプ種)の種小名はラテン語の「venator」(ハンター、猟師)による[1]。
形態

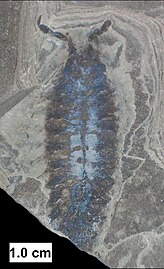
体長約1.6 - 4.5cmで[2][8]、鎌に似た先頭の付属肢(関節肢)と複雑な胴肢が特徴的な節足動物である[2]。全身の輪郭は楕円形だが、頭部の背甲と背板の出っ張りは貧弱で化石に保存されない場合が多いため、ほとんどの化石標本はやや細い本体部分(軸部 axial region)のみ見られる[2]。本質が不確実で複数の解釈を与えられる特徴が多い[2]。
頭部
頭部の本体部分は台形で、全貌不明の1枚の背甲(carapace, head shield)に覆われ、眼は少なくとも中央やや前方に1対ある[2]。この眼は発達した個眼らしき構造をもつため複眼(側眼)だと考えられるが、他の部位の解釈(後述)により発達した中眼(単眼)とも考えられる[2]。腹面中央は1枚のハイポストーマ(hypostome)に覆われ、口はその奥で後ろ向きに開いたと考えられる[2]。
確実に頭部の付属肢対として判断できる部分は次の2対のみ知られる[2]。先頭に突出した1対は強大な鎌状(亜鋏状)で内側に折れ曲がり、少なくとも4節(尖った最終肢節・外側が出張った長い肢節・長方形のやや短い肢節・Yの字型の目立たない肢節)が含まれる[2]。もう1対は細短く、鎌状の付属肢の基部辺りに配置される[2]。
鎌状の付属肢の基部は、ハイポストーマの左右にある長方形の構造体に連結されており、これは頭部内部の筋組織、もしくは鎌状の付属肢の最初肢節だと考えられる[2]。前者の場合、鎌状の付属肢は前述の通り4節で、細短い付属肢より前から生えたとされるが、後者の場合、鎌状の付属肢は5節で細短い付属肢より後ろから生えたとされ、細短い付属肢も退化的な触角として解釈できる[2]。この解釈の違いは、パリオスコーピオの頭部付属肢と体節の対応関係や他の節足動物との類似性に対する見解を大きく左右している(詳細はパリオスコーピオ#体節と付属肢の対応関係とパリオスコーピオ#他の節足動物との比較を参照)[2]。
細短い付属肢の直後は更に1対の丸い構造体があり、これは細短い付属肢の外肢、更に1対の頭部付属肢、もしくは側眼だと考えられる[2]。側眼解釈の場合、前述の頭部中央の眼は中眼だと考えられる[2]。
この頭部に含まれる体節数は不明確である[2]。2対の付属肢(鎌状の付属肢と細短い付属肢)のみに基づくと、頭部は3節の体節(眼とハイポストーマをもつ先節と、それぞれ1対の付属肢をもつ第1と第2体節)のみを含んだとされる[2]。ただし細短い付属肢直後の丸い構造体は更に1対の付属肢だった場合、もしくは正中線に並んだ丸い内部構造の数(9対、これは胴部では1体節つきに2対、詳細は後述参照)に基づくと、頭部は4節以上の体節を含んだと考えられる(丸い構造体は更に1対の付属肢でなかった場合、余った体節の付属肢が退化したと考えられる)[2]。
胴部
胴部は同規的な体節(胴節)が14節含まれ、それぞれ1枚の背板(tergite)に覆われている[2]。背板左右の出っ張り、いわゆる肋部(pleurae)は前方の胴節ほど前に、後方の胴節ほど後ろに向けて湾曲し、後方の数節に棘がある[2]。横幅は第7胴節で最も広く、第8胴節以降から徐々に狭くなりながら緩い曲線を描くが、第8-14胴節辺りでは本体部分のみややくびれている[2]。尾端は三叉状で、少なくとも中央1本の棘が尾節(telson)である[2]。残り左右2つの棘は最終胴節(第14胴節)の出っ張りの棘、もしくは尾節由来の尾叉(furcae)だと考えられる[2]。肛門は尾節直前の腹面にある[2]。
各胴節の本体部分の両腹面に1対の付属肢(胴肢)がある[2]。前の12対は複雑な多枝型(multiramous)の脚で、内側から外側にかけて原節(basipod、分岐直前にある最初の肢節)由来と思われる内突起(basipodal endite)・内肢由来と思われる毛束(walking leg bundle)・歩脚型の内肢(endopod)・前後2枚の鞘状構造に覆われる総状の毛束(racemose bundle)・羽毛状の突起という5つの分岐が並んでいる[2]。しかし一部の分岐は付け根が不明のため、由来は判断しにくい[2]。特に最後2つの分岐は、それぞれ内肢由来の外葉(exite)と外肢(exopod)、もしくは外肢と原節由来の外葉という2つの解釈が考えられる[2]。最終2対の胴肢は扇形に広げた櫛のような構造体で、最後の1対は肛門を被っている[2]。
内部構造
消化系・筋肉組織・神経系などと思われる痕跡が知られている[2]。正中線で対になる丸い構造体は頭部に最多9対、各胴節に2対並んでおり、これは消化管の分岐(消化腺、digestive gland)もしくは付属肢の筋肉の付着面(apodeme)だと考えられる[2]。1対の腹神経索(ventral nerve cord)は胴部の正中線で密着するが、第1胴節でYの字型に分かれ、直前の頭部に食道孔(oesophageal foramen、脳と腹神経索の間に消化管が貫通する穴)があることを示唆する[2]。各胴節の左右には胴肢の筋組織と思われるアーチ状の痕跡がある[2]。
体節と付属肢の対応関係
パリオスコーピオの体節と付属肢の対応関係、特に他の節足動物の頭部付属肢との相同性は、前述の長方形の構造体の正体によって次の通りに解釈が変わる[2]。
体節(脳神経節) 分類群 |
1(中大脳) | 2(後大脳) |
|---|---|---|
| パリオスコーピオ(長方形の構造体=頭部内部の筋組織) | 鎌状の付属肢 | 細短い付属肢 |
| パリオスコーピオ(長方形の構造体=鎌状の付属肢の最初肢節) | 細短い付属肢(触角) | 鎌状の付属肢 |
| フーシェンフイア類 | 触角 | SPA(異説あり[9][10]) |
| メガケイラ類 | 大付属肢 | 脚 |
| Artiopoda類(三葉虫・光楯類・ケロニエロン類など) | 触角 | 脚 |
| 鋏角類(クモ・サソリ・カブトガニ・ウミグモなど) | 鋏角 | 触肢 |
| 大顎類(多足類・甲殻類・六脚類など) | 第1触角 | 第2触角/(退化) |

他の節足動物との比較


節足動物として一般的な共通点(例えば複眼・背甲・背板・肋部・関節肢などをもつこと)を除き、パリオスコーピオは独特で難解な部分が多い[2]。解釈によって特定の節足動物(主にフーシェンフイア類)との類似性が僅かに見出せるものの、残りの相違点が著しいため、全体的にどの節足動物の分類群の基本体制にも当てはまらない[2]。類似点と相違点は次の通り。
- Artiopoda類・メガケイラ類・フーシェンフイア類
- パリオスコーピオの鎌状の付属肢は後大脳性/第2体節由来だった場合、後大脳性付属肢が強大化した所はフーシェンフイア類のSPAとごく一部のArtiopoda類(ケロニエロン類、Kodymirus)の第2付属肢に似ている[2]。それに踏まえて、もしパリオスコーピオの頭部は本当に3節のみを含めば、頭部の体節数までフーシェンフイア類に似た可能性もある(ただしフーシェンフイア類の頭部構成に関しては、前述の対応関係に疑問をかける異説もいくつかある。詳細はフーシェンフイア類#頭部付属肢と体節の対応関係を参照[11][9][10])[2]。一方、パリオスコーピオの鎌状の付属肢は中大脳性/第1体節由来だった場合、中大脳性付属肢が強大化した所はメガケイラ類の大付属肢に似ている[2]。ただし、パリオスコーピオの頭部は多肢節型の触角や(Artiopoda類とメガケイラ類がもつ)複数対の歩脚型付属肢はなく、胴肢もこれらの群の二叉型付属肢との類似性が低く、胴肢と背板もお互いに対応しておりフーシェンフイア類のような非対応性がない[2]。
上述の分類群以外では、マーレロモルフ類(強大な突起をもつ頭部・肋部をもたない胴部・環節に細分された外肢)、ユーシカルシノイド類(前後分化した胴部・胴肢と背板の非対応性・多肢節で単枝型の胴肢)、Hymenocarina類(発達した背甲・肋部をもたない胴部)、イソキシス類(二枚の半円形の背甲・背板のない胴部・二叉型付属肢)、ラディオドンタ類(放射状の口器・前大脳性の可能性がある頭部付属肢・背板と関節肢をもたない胴部)などもパリオスコーピオとは明らかに異なる[2]。
生態

パリオスコーピオは浅い海もしくは汽水域にかけて生息し、待ち伏せ型の捕食者であったと考えられる[2]。筋肉質で鎌状の頭部付属肢は水生カメムシ類(タガメ、コオイムシ、タイコウチ、アシブトメミズムシなど)の前脚のように、普段は頭部の左右に折りたたんで、捕食の際に前へ射出して獲物を捕獲できたと推測される[2]。脚の一部の毛束は感覚に、最終2対の胴肢は尾扇のように突進や後退に用いられ、特に最終の胴肢は肛門を被うため、糞を掃除する機能もあったと考えられる[2]。
発見と分類
2021年現在、パリオスコーピオ(パリオスコーピオ属 Parioscorpio)はアメリカウィスコンシン州の堆積累層 Waukesha Biota(古生代シルル紀テリチアン期、約4億3,750万 - 4億3,650万年前[1])で見つかった Parioscorpio venator という1種のみによって知られる[2]。
パリオスコーピオは明らかに節足動物であるが、節足動物内での位置付けは昔今を通じて解釈が大きく変わった[2]。1980年代では甲殻類と思われ[3][4]、2010年代後期では複数の化石がケロニエロン類と最古のサソリとしてばらばらに記載され[5][6][1][7]、2021年ではどの分類群にも当てはまらない特徴をもつ、所属不明の節足動物として再記載された[2]。


- "触肢"(pr, pm, ppt, pfm, ptr, pp, fx)→ 鎌状の付属肢
- "触肢のハサミの可動指"(fr)→ 存在しない
- "脚"(tr, fe, pa, wl)→ 短い頭部付属肢
- "前体"(prosoma)→ 1対の長方形の構造体
- "側眼"(le)、鎌状の付属肢と長方形の構造体の連結部
- UGWM 2162 の「?」 → 短い頭部付属肢の外肢もしくは側眼
- UGWM 2163 の "4対の脚の基節"(cx)→ 1対の長方形の構造体(第1-3対)と第1-2胴節(第4対)
- "前体の腹板"(st?)→ 消化腺
- "出っ張りをもたない12節の後体"(mesosoma, metasoma, stn, mt)→ 出っ張りをもつ14節の胴部(出っ張りは UGWM 2162 に保存されず、UGWM 2163 の後方で薄っすらに見られる)
- UGWM 2163:stn1直前のcx → 第1-2胴節、stn1-6 → 第3-8胴節、stn7 → 第9-10胴節、mt1-4 → 第11-14胴節、mt5 → 存在しない
- "折り畳んた尾節の毒嚢"(pv)→ 最終胴肢の痕跡
- "循環系"(pc, ps)→ 腹神経索(pc)と胴肢の筋肉(ps)
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| Anderson et al. 2021 の系統解析に示される節足動物におけるパリオスコーピオの様々な系統的位置[2] †:絶滅群 ?:不確実の系統関係 *:パリオスコーピオの旧解釈に当たる分類群 |


パリオスコーピオの化石標本は Mikulic 1985 で最初に記載されたが、当時は命名がなされておらず、暫定的に鰓脚類もしくはムカデエビの甲殻類と解釈された[3][4]。パリオスコーピオはあれから30年ほど研究が進んでいなかったが、2010年代後期、比較的完全な一部の化石標本(UGWM 2436, 2437, 2535)は、Andrew J. Wendruff の2016年の卒業論文(Wendruff 2016)と2018年の査読前論文(Wendruff 2018)でケロニエロン類の非正式の新属 Latromirus(Wendruff 2018 では "Xus" という仮名で表記)に由来と解釈された[5][6]。そして一部の不完全な化石標本(UGWM 2162, 2163)はサソリと解釈され[5][7]、Wendruff et al. 2020a に新属パリオスコーピオ(Parioscorpio)として正式に命名された[1]。同時に、パリオスコーピオの中体(サソリの後体の前半部)と解釈された部分は、原始的なサソリの特徴である6枚以上の腹板が7枚(上の図の「stn1-7」)で知られるどのサソリよりも多いとされ、産出する堆積累層 Waukesha Biota(約4億3,750万 - 4億3,650万年前)も当時知られる最古のサソリであるドリコフォヌス(Dolichophonus)の生息時代(約4億3,600万 – 4億2,800万年前)より少し古かったため、知られる中では最も原始的で、新たな最古のサソリともされてきた[1]。
 Anderson et al. 2021 の再記載を基に、所属不明の節足動物として復元されたパリオスコーピオ[2]
パリオスコーピオの上述の化石標本は、Anderson et al. 2021 で新たな標本と共に再記載された[2]。かつてそれぞれケロニエロン類とサソリとして解釈された標本は全て同種で、Wendruff et al. 2020a にサソリ的と解釈された部分は全てがサソリらしからぬ特徴だと再解釈され、サソリ的なシルエットは化石の不完全な保存状態によるものだと判明した(左右の出っ張り・胴肢・三叉状の尾端が不明瞭の場合のみシルエットがサソリに似ている)[2]。こうしてパリオスコーピオはArtiopoda類のケロニエロン類でも鋏角類のサソリでもなく、研究の初期段階ではメガケイラ類と予想された[2]。しかし詳細な再検証と系統解析(後述)をなされたところ、パリオスコーピオはメガケイラ類どころか、知られるどの節足動物の分類群にも当てはまらないほど独特な種類だと示唆される(詳細はパリオスコーピオ#他の節足動物との比較を参照)[2]。
パリオスコーピオのいくつかの特徴が難解で諸説に分かれた(前述参照)ため、系統的位置は不確実で、Anderson et al. 2021 の系統解析では解釈の違いにより複数の相容れない解析結果を与えられた[2]。例えば鎌状の付属肢は中大脳性(短い頭部付属肢は後大脳性)で脚の外側2つの分岐は外肢と内肢の外葉だった場合、パリオスコーピオはオパビニア・ラディオドンタ類・イソキシス類・フーシェンフイア類・ユーシカルシノイド類より派生的で、残り全ての節足動物(大顎類・Hymenocarina類・鋏角類・Artiopoda類・マーレロモルフ類)より基盤的とされる[2]。しかし鎌状の付属肢は後大脳性(短い頭部付属肢は中大脳性)で頭部左右の丸い構造体は側眼だった場合、パリオスコーピオはフーシェンフイア類と同じ程度基盤的とされる[2]。脚の外肢と外葉の解釈により、フーシェンフイア類・ユーシカルシノイド類・Hymenocarina類と単系統群になったりなれなかったりするという不確かな結果も挙げられる[2]。
それ以降、Braddy & Dunlop 2021 ではパリオスコーピオが再びケロニエロン類に類するものと再解釈された[8]が、この見解は Van Roy et al. 2022 により否定される[12]。Pulsipher et al. 2022では、同累層から記載された基盤的な大顎類Acheronauta stimulapisの系統分析においてコード化され、Artiopoda類と大顎類の中間に配置された[13]。Gass and Braddy 2023においては、カナダ・オンタリオ州のシルル紀の化石産地Eramosa Memberから知られる節足動物化石との共通点が示唆された[14]。
脚注
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 Wendruff, Andrew J.; Babcock, Loren E.; Wirkner, Christian S.; Kluessendorf, Joanne; Mikulic, Donald G. (2020-01-16). “A Silurian ancestral scorpion with fossilised internal anatomy illustrating a pathway to arachnid terrestrialisation”. Scientific Reports 10: 14. doi:10.1038/s41598-019-56010-z. ISSN 2045-2322. PMC 6965631. PMID 31949185.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 21 22 23 24 25 26 27 28 29 30 31 32 33 34 35 36 37 38 39 40 41 42 43 44 45 46 47 48 49 50 51 52 53 54 55 56 57 58 59 60 61 62 63 64 65 66 67 68 69 Anderson, Evan P.; Schiffbauer, James D.; Jacquet, Sarah M.; Lamsdell, James C.; Kluessendorf, Joanne; Mikulic, Donald G. (2021). “Stranger than a scorpion: a reassessment of Parioscorpio venator, a problematic arthropod from the Llandoverian Waukesha Lagerstätte” (英語). Palaeontology 64 (3): 429–474. doi:10.1111/pala.12534. ISSN 1475-4983.
- 1 2 3 Mikulic, Donald G.; Briggs, Derek E. G.; Kluessendorf, Joanne (1985). “A Silurian Soft-Bodied Biota”. Science 228 (4700): 715–717. ISSN 0036-8075.
- 1 2 3 Mikulic, D. G.; Briggs, D. E. G.; Kluessendorf, Joanne (1985). “A New Exceptionally Preserved Biota from the Lower Silurian of Wisconsin, U.S.A.”. Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences 311 (1148): 75–85. ISSN 0080-4622.
- 1 2 3 4 Wendruff, Andrew J. (2016-01-01) (英語). Paleobiology and Taphonomy of Exceptionally Preserved Organisms from the Brandon Bridge Formation (Silurian), Wisconsin, USA.
- 1 2 3 Wendruff, Andrew J.; Babcock, Loren E.; Mikulic, Donald G.; Kluessendorf, Joanne (2018-09-07) (英語). New cheloniellid arthropod with large raptorial appendages from the Silurian of Wisconsin, USA. pp. 407379. doi:10.1101/407379.
- 1 2 3 Wendruff, Andrew J.; Babcock, Loren E.; Kluessendorf, Joanne; Mikulic, Donald G. (2020-05). “Paleobiology and taphonomy of exceptionally preserved organisms from the Waukesha Biota (Silurian), Wisconsin, USA” (英語). Palaeogeography, Palaeoclimatology, Palaeoecology 546: 109631. doi:10.1016/j.palaeo.2020.109631.
- 1 2 Braddy, Simon J.; Dunlop, Jason A. (2021-12-16). “A sting in the tale of Parioscorpio venator from the Silurian of Wisconsin: is it a cheloniellid arthropod?” (英語). Lethaia: let.12457. doi:10.1111/let.12457. ISSN 0024-1164.
- 1 2 3 Aria, Cédric; Zhao, Fangchen; Zhu, Maoyan (2021-02-17). “Fuxianhuiids are mandibulates and share affinities with total-group Myriapoda”. Journal of the Geological Society 178 (5): jgs2020–246. doi:10.1144/jgs2020-246. ISSN 0016-7649.
- 1 2 3 Budd, Graham E. (2021-05). “The origin and evolution of the euarthropod labrum” (英語). Arthropod Structure & Development 62: 101048. doi:10.1016/j.asd.2021.101048.
- 1 2 Ortega-Hernández, Javier; Janssen, Ralf; Budd, Graham E. (2017-05-01). “Origin and evolution of the panarthropod head – A palaeobiological and developmental perspective” (英語). Arthropod Structure & Development 46 (3): 354–379. doi:10.1016/j.asd.2016.10.011. ISSN 1467-8039.
- ↑ Roy, Peter Van; Rak, Štěpán; Budil, Petr; Fatka, Oldřich (undefined/ed). “Redescription of the cheloniellid euarthropod Triopus draboviensis from the Upper Ordovician of Bohemia, with comments on the affinities of Parioscorpio venator” (英語). Geological Magazine: 1–19. doi:10.1017/S0016756822000292. ISSN 0016-7568.
- ↑ Pulsipher, Mikaela A.; Anderson, Evan P.; Wright, Lauren S.; Kluessendorf, Joanne; Mikulic, Donald G.; Schiffbauer, James D. (2022-12-31). “Description of Acheronauta gen. nov., a possible mandibulate from the Silurian Waukesha Lagerstätte, Wisconsin, USA”. Journal of Systematic Palaeontology 20 (1): 1–24. doi:10.1080/14772019.2022.2109216. ISSN 1477-2019.
- ↑ Gass, Kenneth C.; Braddy, Simon J. (2023-09). “The Waukesha Biota: a wonderful window into early Silurian life” (英語). Geology Today 39 (5): 169–176. doi:10.1111/gto.12447. ISSN 0266-6979.